evidence
演化的证据链
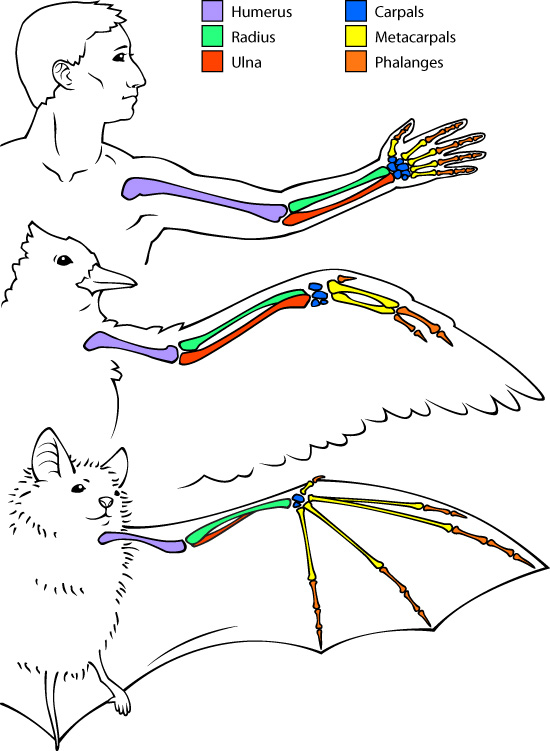
比较解剖学揭示同源器官(人臂、鲸鳍、蝙蝠翼的骨骼同源)与同功器官(鸟翼与昆虫翅功能相似但来源不同);胚胎学显示脊椎动物胚胎早期相似;古生物学记录形态演化序列;分子证据显示序列相似度与亲缘关系一致。关键区别:同源看"来源",同功看"功能"。
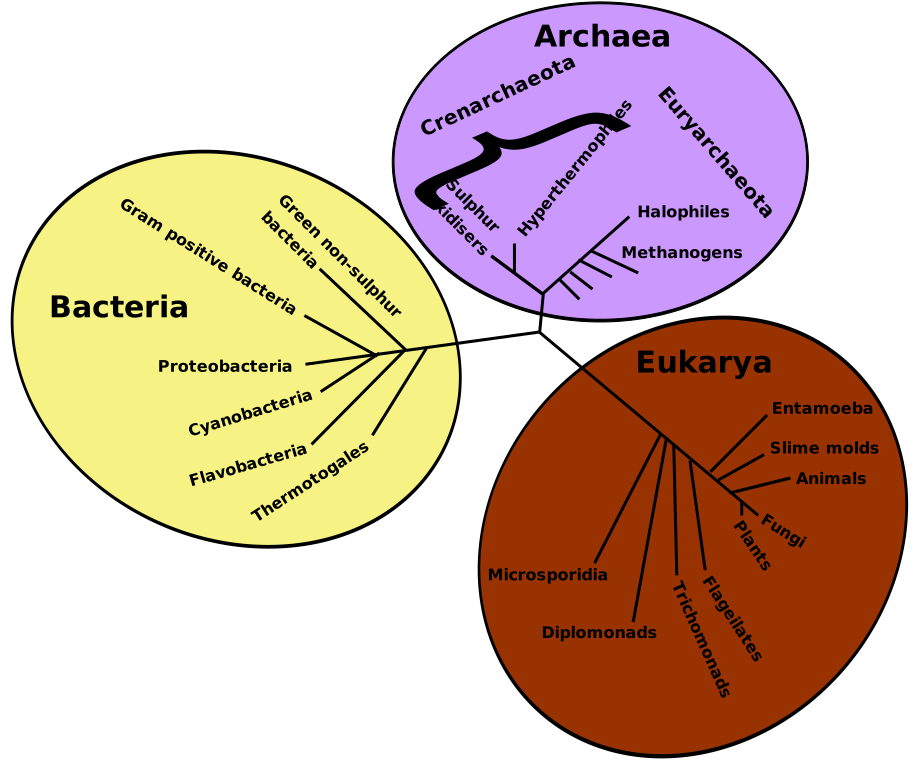
每个概念配一张图。点击"标记已掌握"记录进度,进度保存在本地浏览器。
比较解剖学揭示同源器官(人臂、鲸鳍、蝙蝠翼的骨骼同源)与同功器官(鸟翼与昆虫翅功能相似但来源不同);胚胎学显示脊椎动物胚胎早期相似;古生物学记录形态演化序列;分子证据显示序列相似度与亲缘关系一致。关键区别:同源看"来源",同功看"功能"。
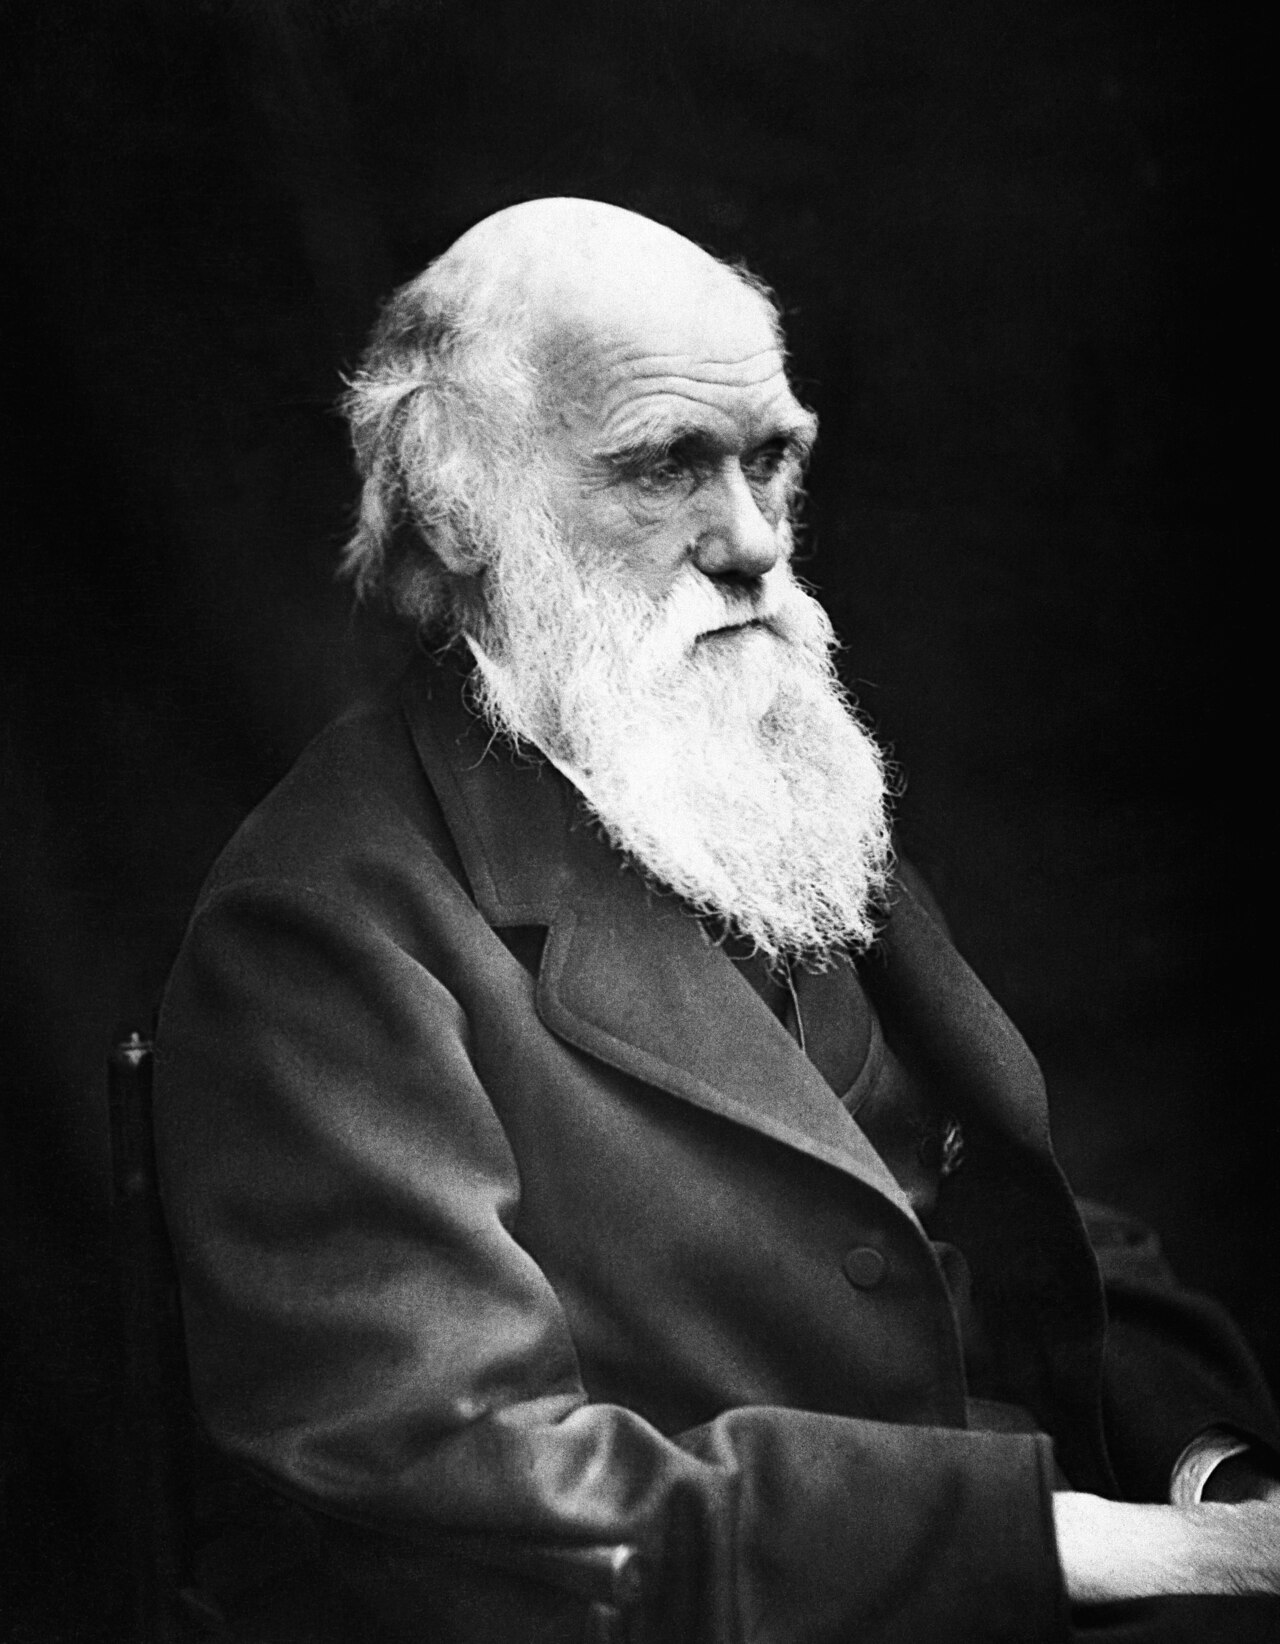
达尔文自然选择需要四个条件:个体间存在可遗传的变异;变异导致繁殖成功度差异(适合度差异);差异可遗传;经过足够世代累积。达尔文当年难以解释的是"变异的来源"与"遗传机制",孟德尔遗传学填补了这两块空白,才有了现代综合理论。
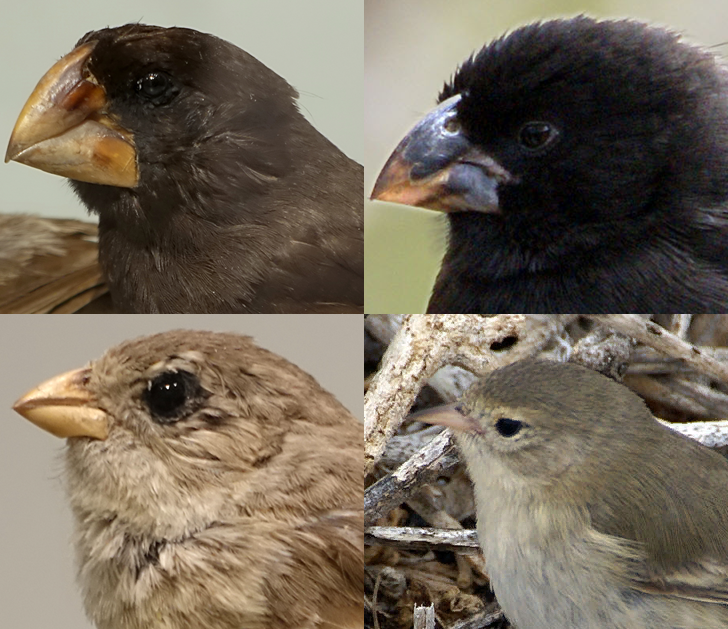
遗传漂变在小种群中尤其重要,等位基因频率随机波动,甚至导致有害等位基因固定。基因流动在群体间引入等位基因,常降低分化。选择的强度与方向则取决于环境。当选择较弱而漂变较强时,中性演化理论(Kimura)占据主导地位。
蛋白质与 DNA 序列的差异随时间累积,多数位点近似中性。比较不同基因的替代速率可以估计谱系分化时间:线粒体 DNA 突变快(母系、单倍型,适合近缘关系),rRNA 保守(适合远缘关系)。分子钟需校正多次突变带来的饱和效应。
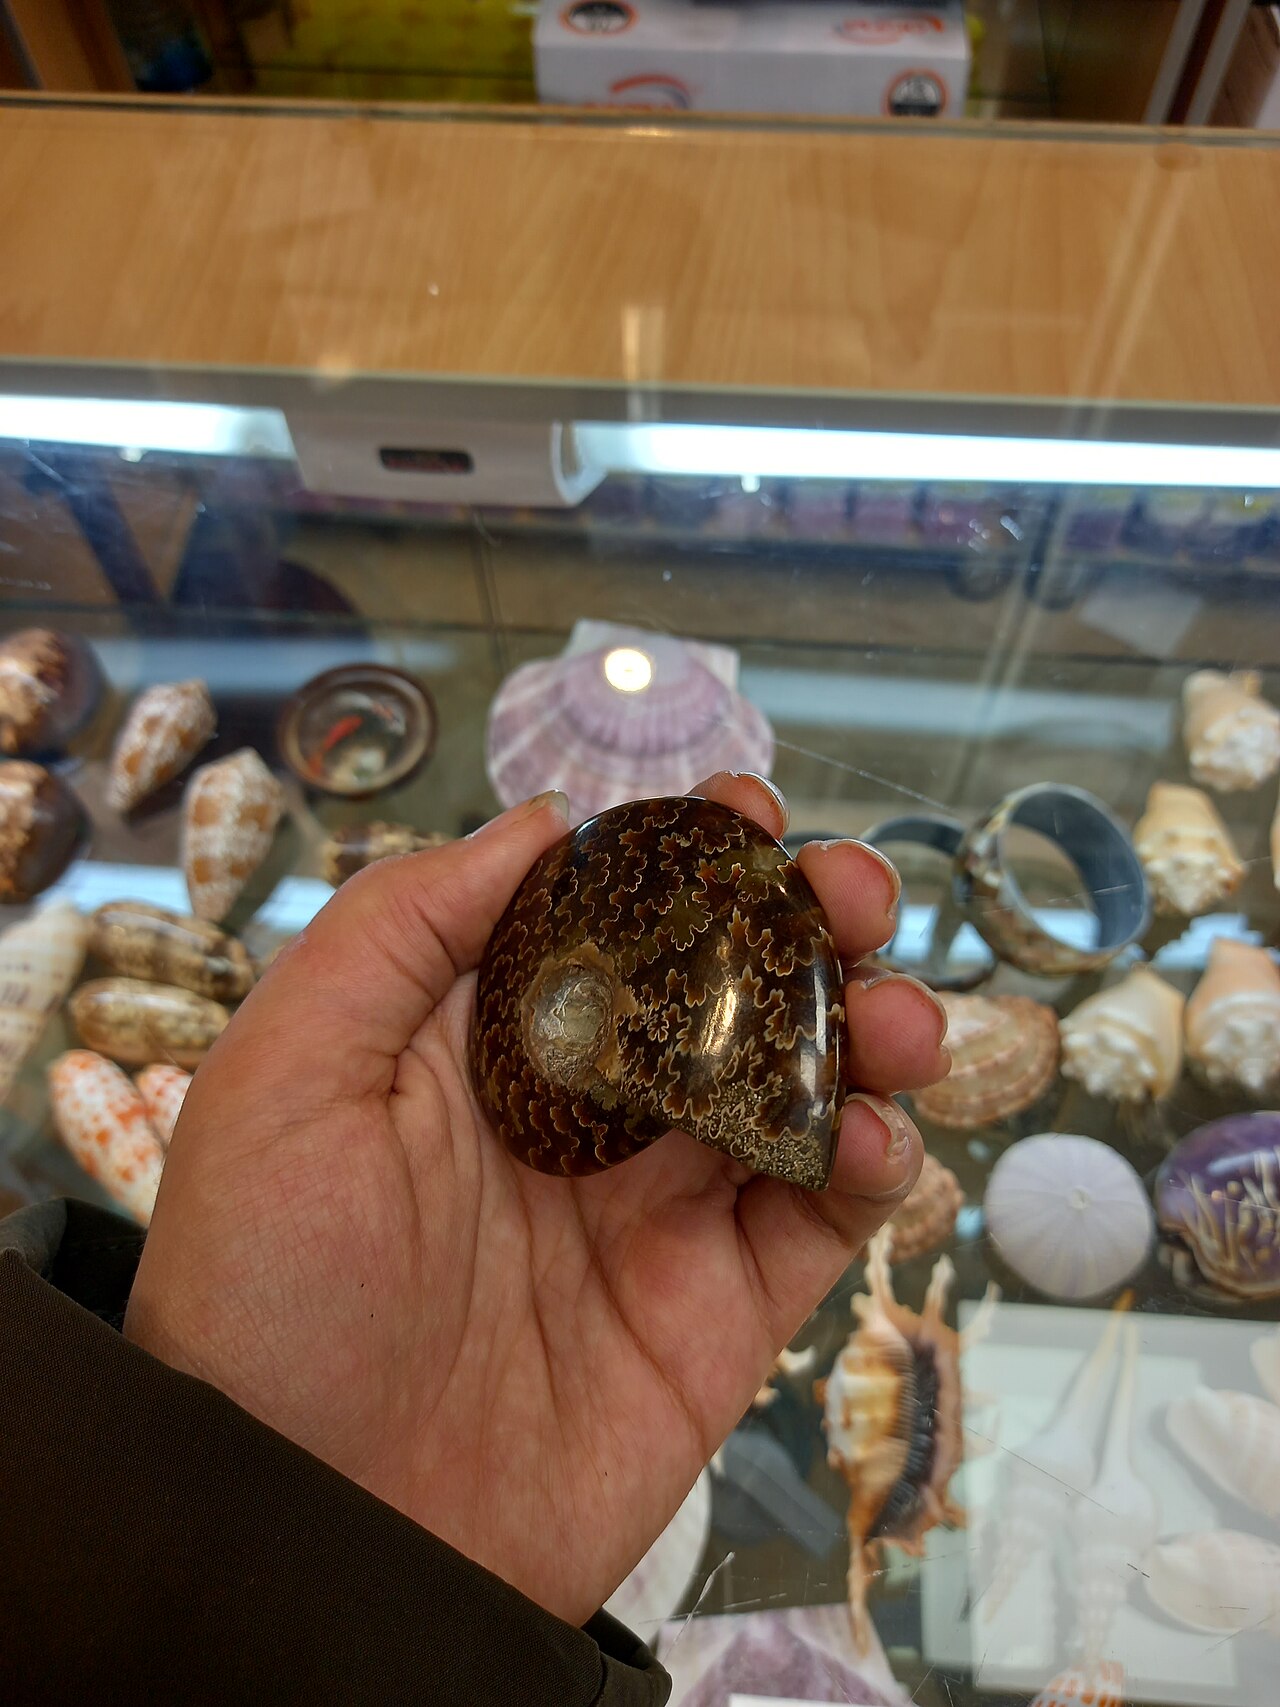
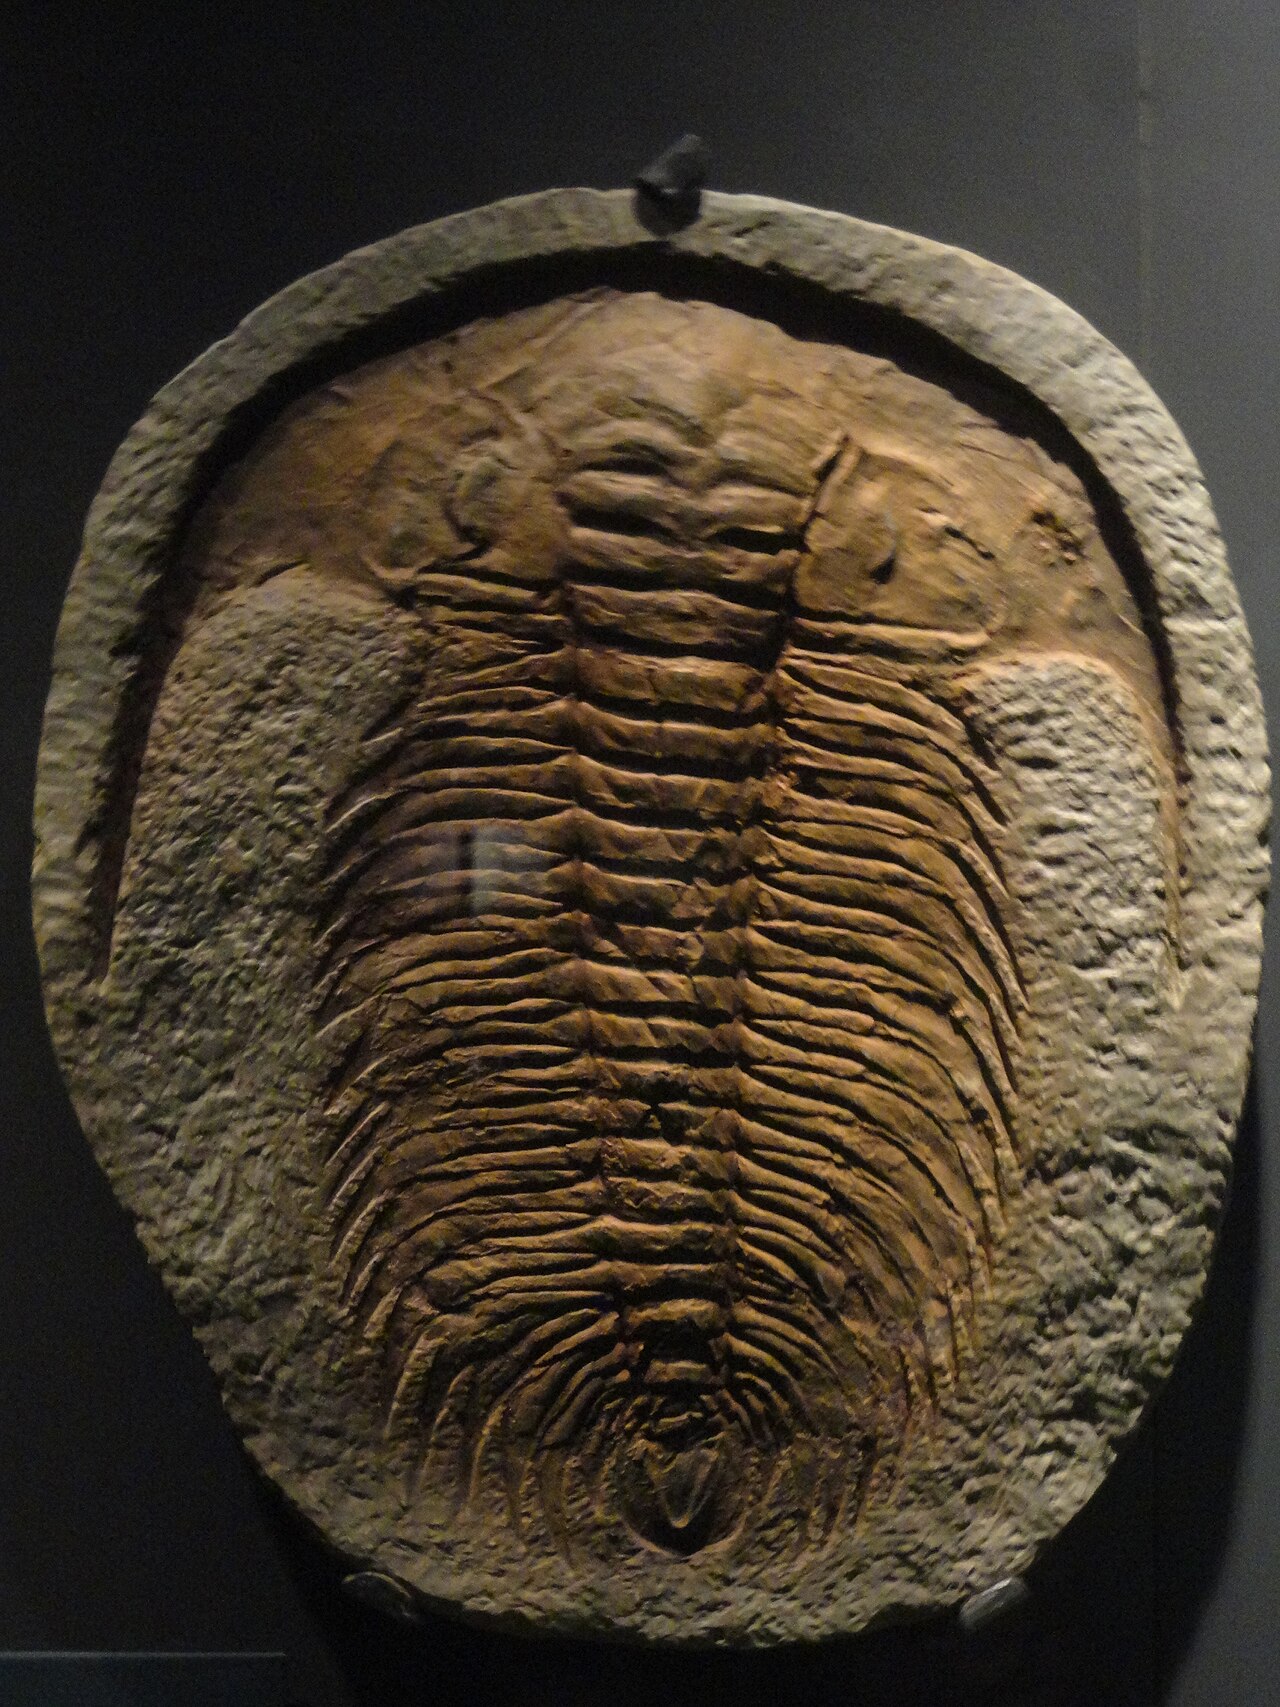
微演化指种群内等位基因频率的世代变化,可在实验与野外观测中直接测量;宏演化指物种以上的演化模式,如物种形成与灭绝,由微演化过程累积而成。化石记录揭示的形态大跃迁(如寒武纪大爆发)背后,往往是许多微小的遗传变化与生态空位的共同作用。
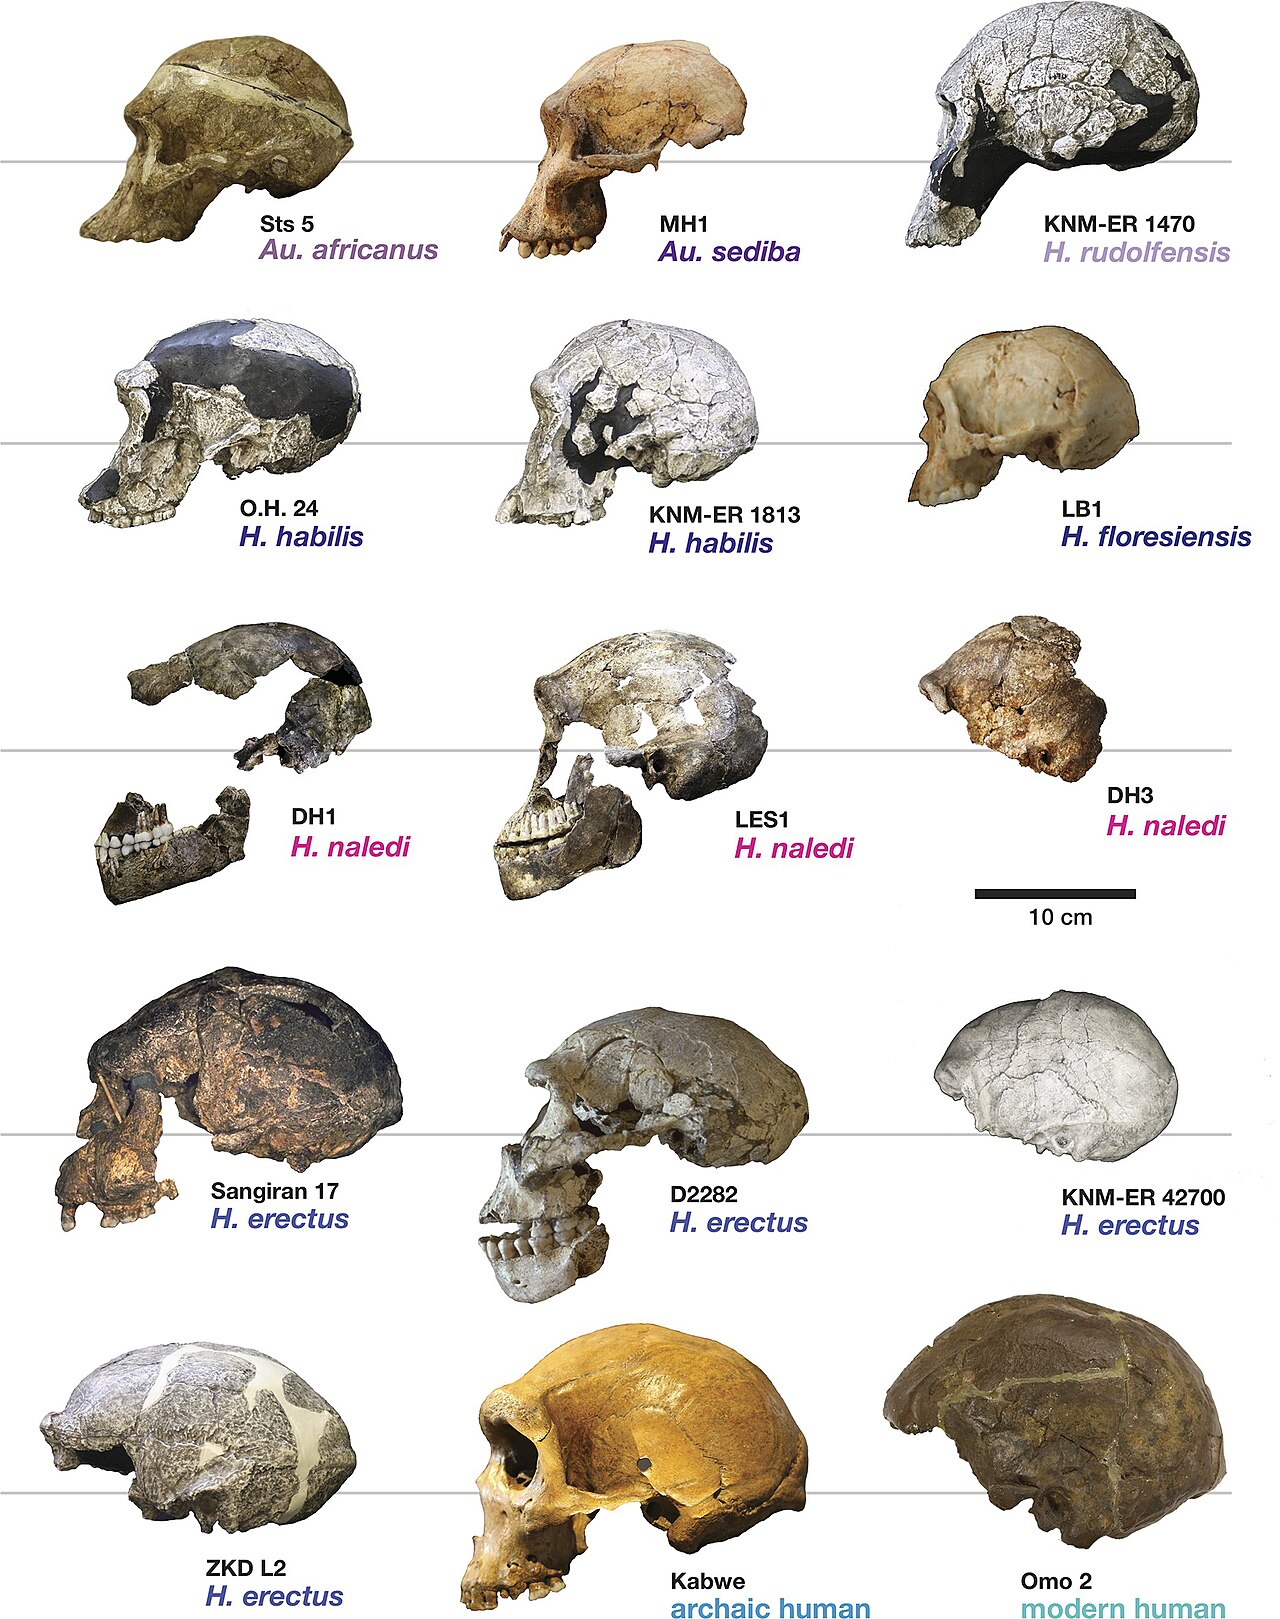
从 700 万年前与黑猩猩支系分离开始,人类谱系经历乍得沙赫、南方古猿、傍人、智人等阶段。关键特征包括两足直立、犬齿退化、颅容量扩大、工具与语言。尼安德特人与丹尼索瓦人的基因测序显示,智人曾与其多次杂交并保留少量基因——演化不是简单的线性替代。
全部图片来自 Wikimedia Commons,遵循各自许可协议,点击图片可查看完整署名信息。
演化论主张人类与其他灵长类共享共同祖先,人是从已灭绝的祖先种群演化而来,现代猿是"表亲"而非"祖先"。
演化没有方向也没有目的,是环境选择作用于可遗传变异的结果。
同功器官是趋同演化的产物——相似环境与功能需求塑造出相似结构,而非设计。
耐药性正是演化的直接证据:抗药性突变先于用药出现,用药只是选择压力。
选择后立即给出解析,不计入任何记录,放心试错。