结构
DNA 双螺旋与信息存储
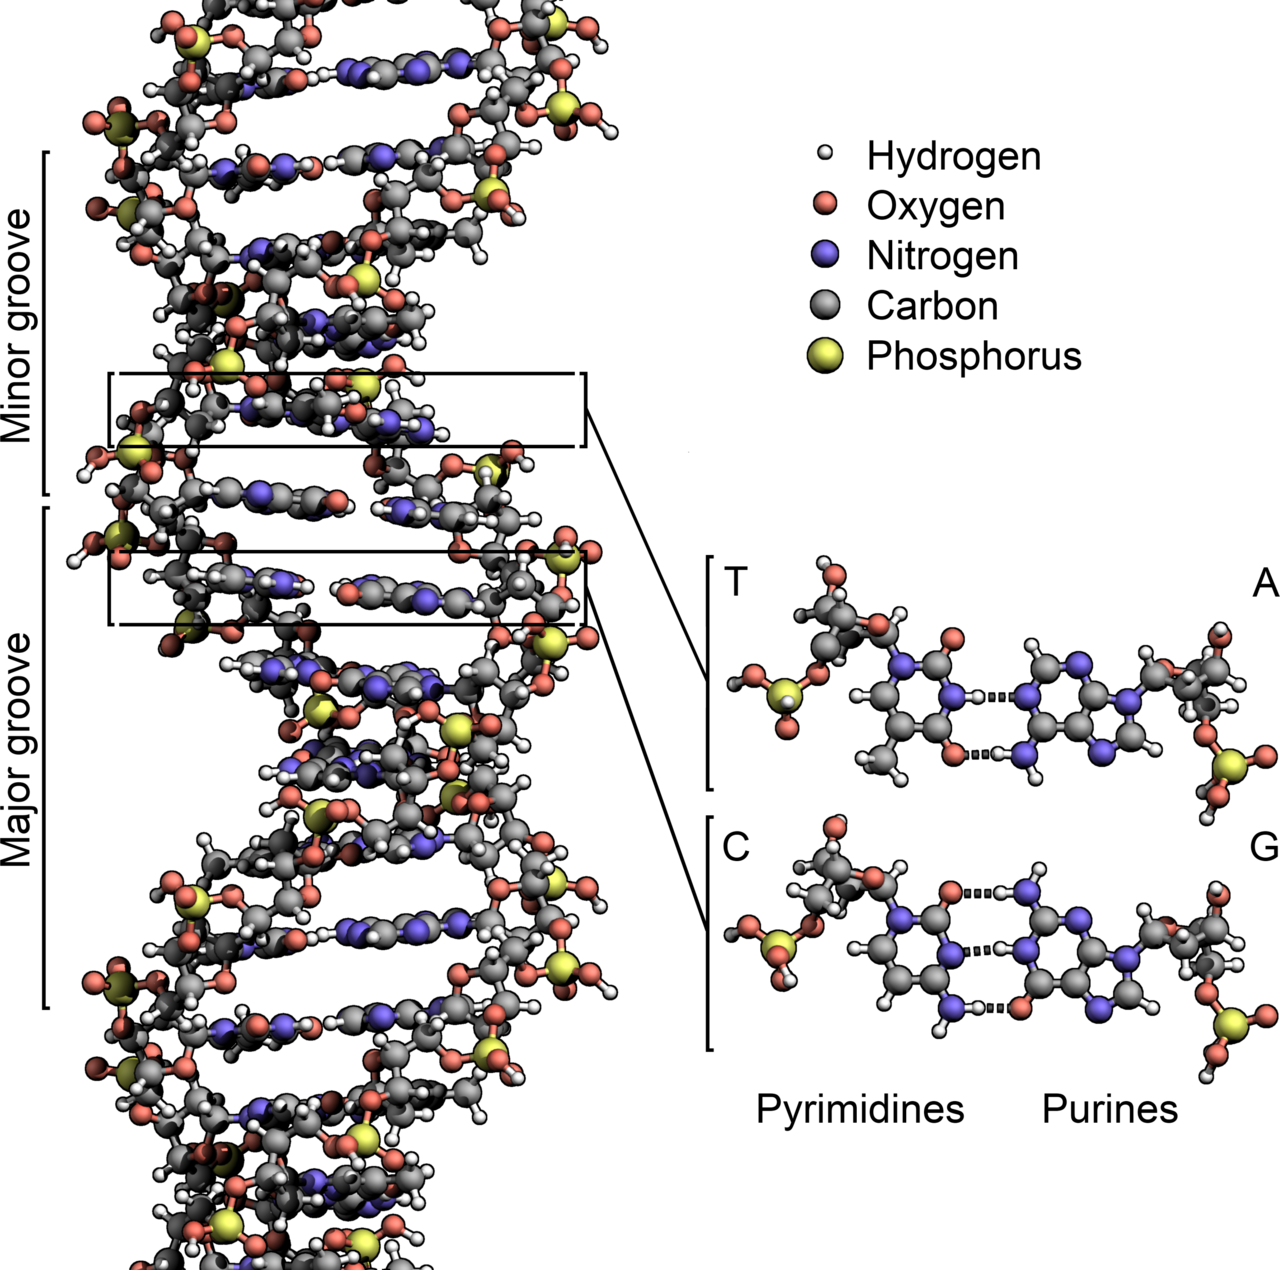
两条反向平行多核苷酸链通过碱基间氢键配对:A-T 两个氢键,G-C 三个氢键。糖-磷酸骨架在外侧,碱基朝内。互补配对让每条链都能作为模板,这正是复制与转录的化学基础。人类基因组约 32 亿碱基对,编码约 2 万个蛋白编码基因,非编码区却占了绝大部分——包括大量调控元件。
每个概念配一张图。点击"标记已掌握"记录进度,进度保存在本地浏览器。
两条反向平行多核苷酸链通过碱基间氢键配对:A-T 两个氢键,G-C 三个氢键。糖-磷酸骨架在外侧,碱基朝内。互补配对让每条链都能作为模板,这正是复制与转录的化学基础。人类基因组约 32 亿碱基对,编码约 2 万个蛋白编码基因,非编码区却占了绝大部分——包括大量调控元件。
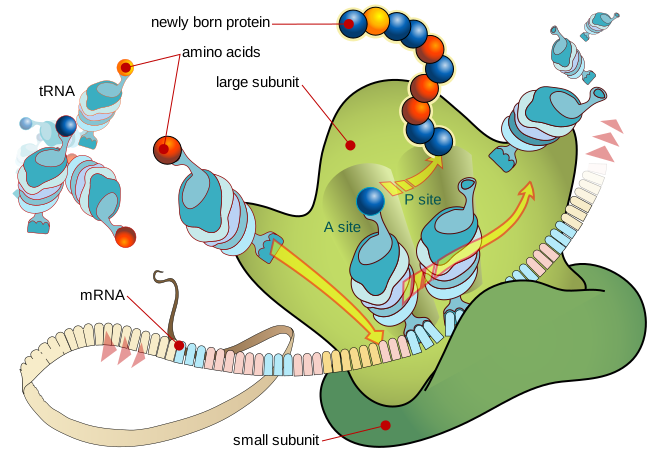
DNA → RNA → 蛋白质是信息传递的主方向。复制(DNA→DNA)、转录(DNA→RNA)、翻译(RNA→蛋白质)构成三个核心过程。RNA 的反向转录(RNA→DNA)修正了"单向"图景,逆转录病毒的存在即是证明;而蛋白质不能反向指导核酸合成,这一边界至今未被突破。中心法则描述的是信息流动方向,不是说 DNA 才能决定一切。
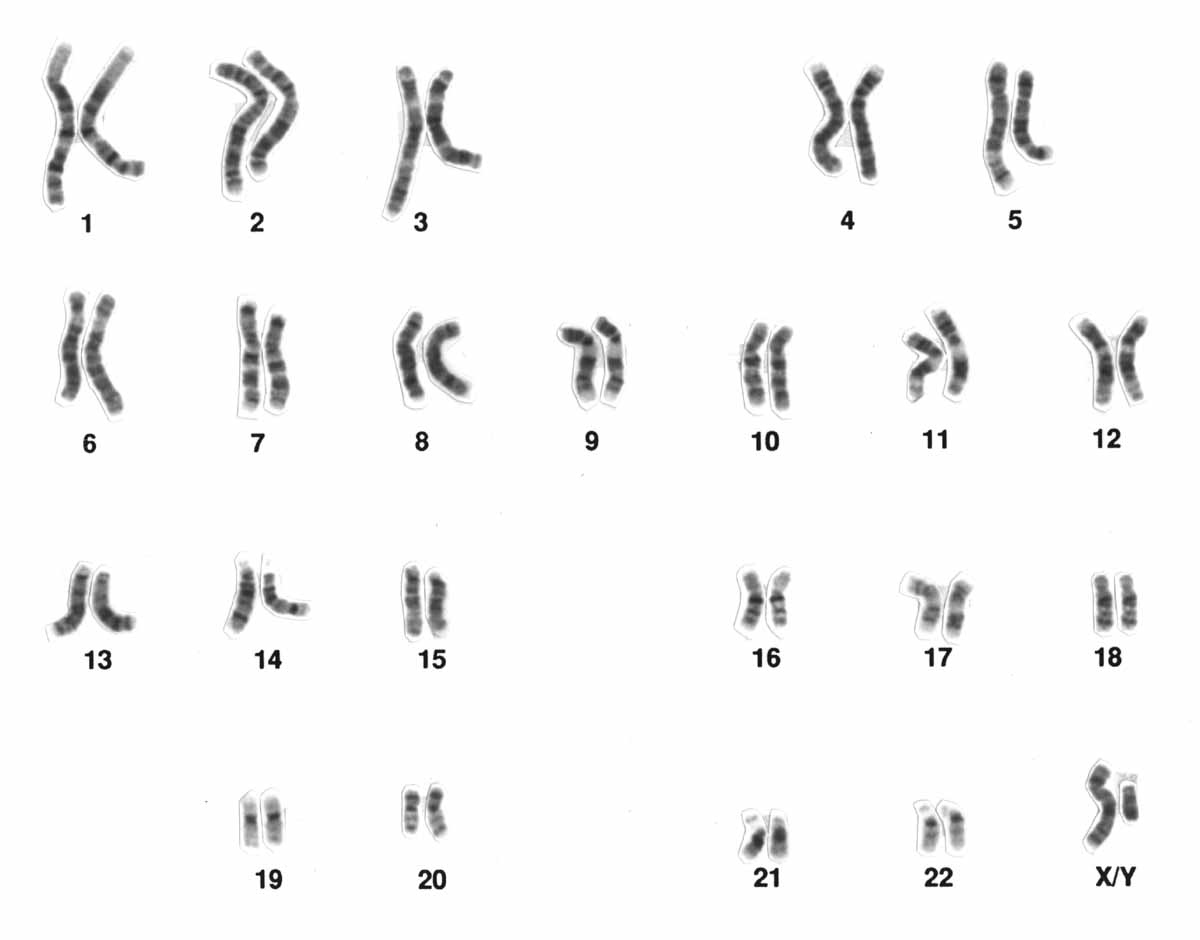
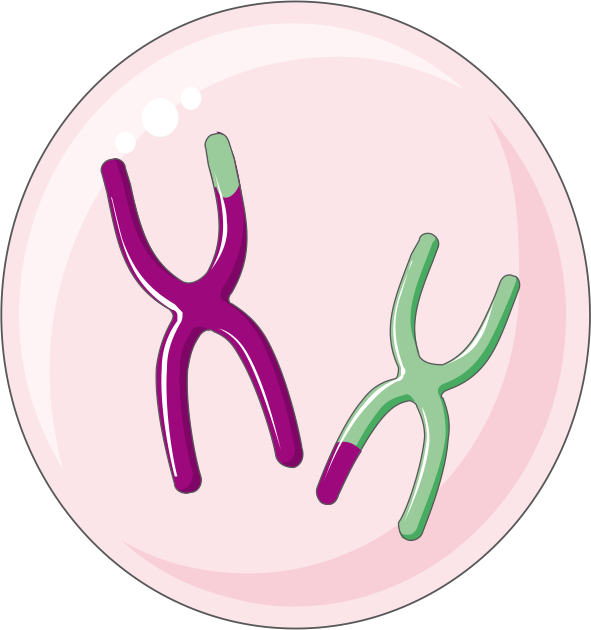
孟德尔用豌豆确立分离定律与独立组合定律,摩尔根用果蝇连锁实验证明基因位于染色体上。减数分裂的染色体行为解释了分离定律的机制,染色体在同源染色体间的交换解释了重组与连锁不完全。人类核型含 23 对染色体,其中 22 对常染色体加 1 对性染色体;唐氏综合征即 21 号染色体三体。
转录起始的转录因子结合启动子与增强子,真核生物还需通过染色质重塑开放基因座;mRNA 经 5′ 加帽、剪接、3′ 加上 poly(A) 尾后出核翻译。调控层次包括:表观遗传(DNA 甲基化、组蛋白修饰)、转录后调控(miRNA、RNA 干扰)、翻译后修饰与蛋白质降解。表观遗传修饰在不改变 DNA 序列的情况下改变表达,可被细胞记忆甚至跨代保留。
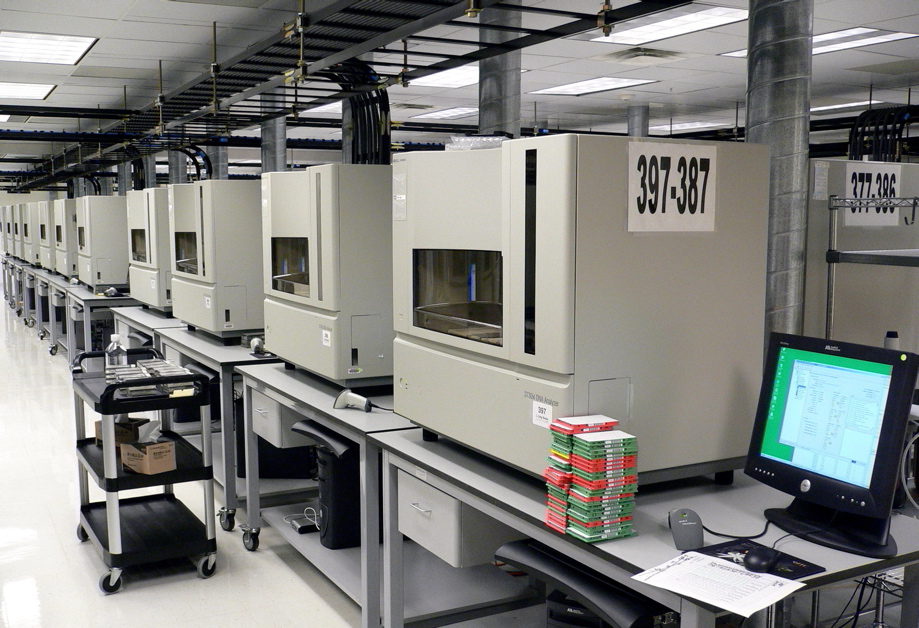
Sanger 测序(双脱氧链终止法)以四色荧光读出序列,奠定了人类基因组计划;二代测序(NGS)通过桥式扩增或边合成边测序实现高通量;三代测序(PacBio、NGS)读长可达超万碱基。人类基因组计划 2003 年完成,随后的基因组学让"个体化医疗""群体基因组学"成为可能,也让"何为基因"的问题不断被修正。
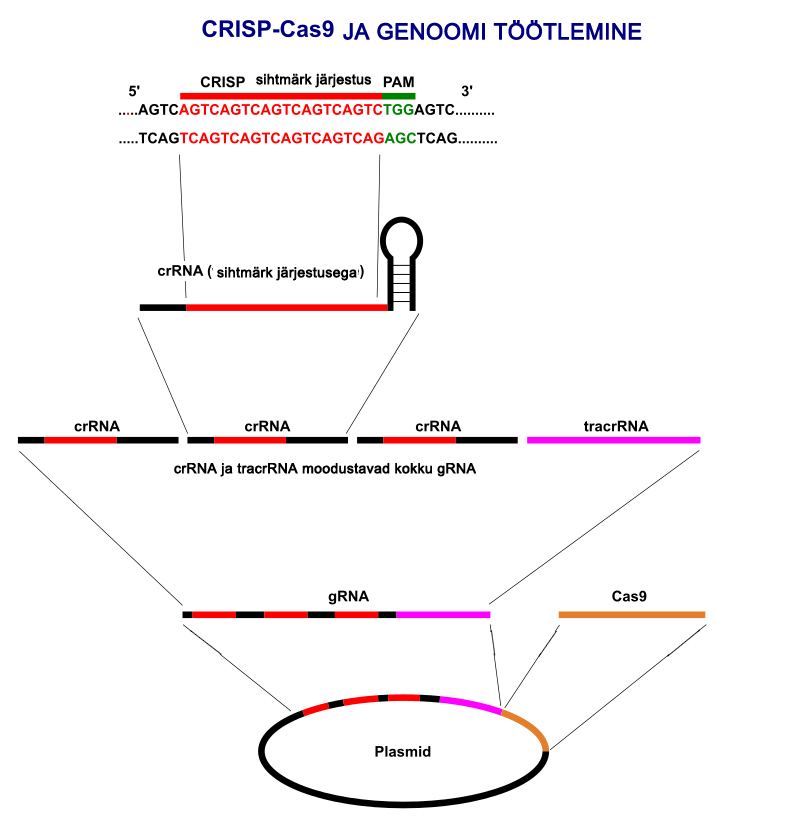
CRISPR-Cas9 源自细菌的适应性免疫系统:向导 RNA 通过碱基互补定位目标 DNA,Cas9 蛋白切割双链,由细胞自身的非同源末端连接(NHEJ)或同源定向修复(HDR)完成修复。真正突破性的是可更换向导 RNA,使编辑从"一个靶点"变成"可编程工具"。主要限制:大分子递送、脱靶编辑、免疫原性,以及嵌合胚胎的伦理边界。
全部图片来自 Wikimedia Commons,遵循各自许可协议,点击图片可查看完整署名信息。
表型 = 基因型 + 环境 + 随机发育变异。同卵双胞胎的差异说明环境贡献真实存在。
中性突变是进化原材料,镰状细胞贫血基因在疟疾高发区具有选择优势。
多基因遗传、数量性状、线粒体遗传、母系效应等都会打破简单分离比模式。
递送效率、脱靶风险、免疫反应与致突变风险使"治愈"目前仍限于特定病种与实验阶段。
选择后立即给出解析,不计入任何记录,放心试错。